Симметрия ДНК

Широко известна круговая таблица генетического кода, впервые опубликованная в 1965 г. Кодоны в ней расположены по часовой стрелке в порядке U, C, A, G в каждом уровне. Представим себе кодон в виде XYZ. Если XY определяет “смысл” (т.е. аминокислоту), то кодон называется “сильным”. Если же для определения смысла кодона нужен определенный Z, то такой кодон называется “слабым”. Можно наблюдать симметрию генетического кода в круговой форме по “силе” и “слабости”. Т.е. при повороте на 180˚ происходит совпадение сильных и слабых кодонов без исключения. Вертикальная и перпендикулярная плоскости и отражение во всех позициях дают замену сильных кодонов на слабые и наоборот. Тот же эффект имеет место при отражении относительно горизонтальной перпендикулярной плоскости. А. Волохонский установил соответствие между общей структурой генетического кода, рядом биномиального разложения 26 и одним из Платоновых тел – икосаэдром. Он также полагает, что икосаэдральная форма и пентамерная симметрия являются фундаментальными в организации живого вещества, хотя такие форма и симметрия известны и для неорганических тел. С этой точки зрения генетический код представляется Волохонским не как случайный продукт эволюционных блужданий, а как закономерное и необходимое следствие исходных принципов – икосаэдральности и пентамерной симметрии, выбранных живой природой для его осуществления, что в известной степени подтверждает выводы О.В. Трапезова. Результаты Волохонского неоднозначны и спорны, хотя, по мнению Урманцева, “ни в какой степени не снижают большой ценности установленных им красивых соответствий”.
В каком-то смысле можно считать антисимметричными друг к другу (“ключ-замок”) пары нуклеотидов аденозин-уридин, аденозин-тимидин, гуанозин-цитидин в РНК и ДНК. Иные их сочетания уже нарушают строй и порядок. В последовательности ДНК существуют палиндромы, порядок нуклеотидов в которых самокомплементарен, например GTACTTG|CAAGTAC. Это как бы является своеобразным проявлением зеркальной антисимметрии. Сайты (участки ДНК), опознаваемые и расщепляемые некоторыми рестрикционными ферментами, имеют ось симметрии второго порядка. Часть рестриктаз расщепляет полинуклеотидную цепь так, что вследствие симметрии расщепляемой последовательности образуются так называемые “липкие” концы. Они могут взаимодействовать друг с другом, образуя совершенные двуспиральные участки.
В-форма спирали ДНК всем известна по множеству рисунков и схем, именно эту форму описали Уотсон и Крик. Это упорядоченная, изящная структура. Спираль может образовывать так называемую суперспираль. Чтобы представить себе это хотя бы приблизительно – вспомним, как скручивается в спираль уже свернутый в “пружинку” провод телефона. Надо заметить, что в то время как у В-формы ДНК существуют малая и большая бороздки, суперспираль скручена “равномерно”.
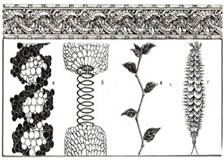 -
Рис. 1. Одномерная симметрия: а — модель молекулы ДНК; б — модель вируса табачной мозаики; в — побег традесканции; г — полихета; наверху — бордюр
Подобные суперскрученные районы есть и у многих белков – кинезинов, миозинов, некоторых белков поддержания структуры конденсированных хромосом. Множество полимеров, образующих живой организм, имеет тенденцию к самоагрегированию, образованию более или менее упорядоченных структур. В процессе конденсации хромосом мы также можем наблюдать разнообразные проявления симметрии, например – зеркальная симметрия скручивающихся при сближении в течение компактизации сестринских хроматид.
Активность основных
карбоксипептидаз у самок мышей при введении
тестостерона и прогестерона
Известно, что тестостерон и прогестерон оказывают влияние на уровень различных пептидных нейрогормонов в организме животных [67, 167, 175, 213, 214, 245, 266, 274], а также на активность некоторых протеолитических ферментов [24, 67, 127, 191] . В связи с этим представляет интерес изучение влияния данных половых стероидов на активность ф ...
Гены LFY (арабидопсиса) и FLO
(львиного зева)
Мутации по гену арабидопсиса LEAFY (LFY) обычно обладают наибольшим фенотипическим проявлением. Даже самые слабые аллели lfy превращают базальные цветки во вторичные генеративные побеги, которые образуются в пазухах небольших околоплодных листьев, похожих на прицветники. Образующиеся позднее цветки характеризуются несколькими признаками ...
Размножение маньчжурского зайца.
Размножение маньчжурского зайца почти не изучено. Начало его гона зарегистрировано в начале февраля. Во второй половине февраля и в марте наблюдалась кровавая моча на снегу. В 1970 г. в верховьях реки Борисовка гон у этих зайцев отмечался с последних чисел февраля до 20 марта. Характерным признаком начала гона, кроме появления кровавой ...