Поступление и превращение азота в растениях. Поглощение азота растением

Формы азота, используемые растением. Азот входит в состав важнейшей части живого организма, а именно в состав запасных белков и белков цитоплазмы. В составе золы азота нет, так как при сжигании растений он образует газообразные окислы. В сухом веществе растения содержится в среднем 1,5% азота. Добывание азота представляет для растения
наибольшие трудности, так как азот не входит в состав минералов и его накопление и превращение в почве полностью связано с жизнедеятельностью организмов.
В почве доступный для растения азот находится в основном в форме нитратов аммонийных солей.
Восстановление нитратов растениями. Нитраты представляют собой окисленную форму азота и должны быть восстановлены растением до NH2, после чего они могут войти в состав аминокислот, а затем белка. Можно считать, что восстановление нитратов идет двумя путями:
1) восстановление за счет химической энергии дыхания и 2) фотохимическое восстановление в хлоропластах.
Восстановление нитратов идет этапами: сначала до азотистой кислоты HNO2, затем до гидрокисламина NH2OH и, наконец, до аммиака NH3. Восстановление нитратов до NH3-и NH2-гpyпп осуществляется с помощью фермента нитратредуктазы, в состав кофермента которой входит молибден.
Восстановленный азот нитратов или непосредственно поглощенный ион аммония, соединяясь с продуктами превращения углеводов, образует аминокислоты, а затем белки. Аммиак, реагируя с некоторыми органическими кислотами, может образовать аминокислоты. Так, например, аммиак, реагируя с пировиноградной кислотой, образует аминокислоту аланин:
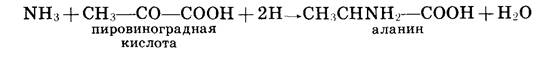
Образовавшиеся белковые вещества подвергаются превращениям в теле растения. Животный организм все время выводит азот из своего тела в виде мочевины и отчасти мочевой кислоты. В отличие от животных растение очень бережно относится к азоту, не теряя его.
При прорастании семян расщепляются запасные белки, а количество конституционных белков не только не уменьшается, а все время увеличивается. Затем происходит накопление белков в связи с переходом растения к автотрофному питанию.
Роль амида, аспарагина, глютамина и мочевины в растении. При восстановлении нитратов, а также при дезаминировании аминокислот (т.е. отщеплении от них аммиака) в растениях может накопляться аммиак, который ядовит для большинства из них. В растении аммиак обезвреживается, так как он связывается аспарагиновой или глутаминовой кислотой, образуя соответственные амиды (аспарагин, глутамин). У многих низших растений образуется мочения:
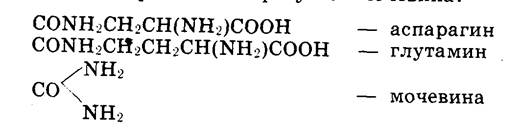
Доказан и прямой синтез мочевины из углеводов и аммиака у многих грибов (дождевики, шампиньоны). Содержание мочевины у дождевиков доходит до 10,7% от сухого вещества. Таким образом, аспарагин, глутамин и мочевина играют большую физиологическую роль, так как являются соединениями, обезвреживающими ядовитое действие аммиака, а также представляют собой резерв аминогрупп NH2 в растении для синтеза аминокислот.
Подводя итоги, можно отметить два типа синтеза белков: первичный и вторичный. В обоих этих синтезах аммиак играет большую роль, что и дало возможность Д.Н. Прянишникову сказать, что аммиак есть альфа и омега (первая и последняя буквы греческого алфавита), т.е. начало и конец, превращения белков в растениях. При первичном синтезе из аммиака и углеводов строится белок (левая часть схемы). При распаде белка образуются аминокислоты, от которых при дезаминировании отщепляется аммиак, связывающийся в аспарагин или глютамин. При вторичном синтезе белков (правая и нижняя части схемы) происходит отщепление аммиака от аспарагина и образование аминокислот из углеводов (вернее, из продуктов их превращения) и аммиака. Все эти представления можно объединить в следующую схему Прянишникова:
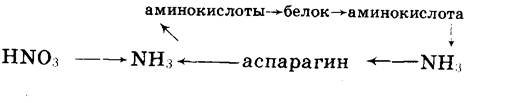
Непищеварительные функции печени
Печень выполняет множество важных для организма функций.
1. Продуцирует желчь.
2. Печень продуцирует многие белки: 100% фибриногена, 96% альбумина, 85% глобулинов, факторы свертывающей и противосвертывающей системы.
3. В печени синтезируются глюкоза, гликоген, жиры, кетоновые тела.
4. В печени происходит связывание аммиака - токсиче ...
Выводы
1. Установлено, что кометаболизм ЭДТА и глюкозы у штамма LPM-4 не оказывает влияния на деградацию ЭДТА.
2. Показано, что ассимиляция глюкозы бактериальным штаммом
3. LPM-4 индуцируется только в процессе интенсивной деградации ЭДТА.
4. Обнаружено, что штамм LPM-4 сохраняет способность к деградации ЭДТА при дополнительном внесении ЭДТА ...
Секвенаторы белков
Остается сказать несколько слов об еще одном автомате, предоставляющем в распоряжение исследователя необходимую для всего дальнейшего последовательность аминокислот в исходном белке. Первый вариант такого автомата был предложен еще в 1967 году Эрдманом и Беггом. Он настолько хорошо зарекомендовал себя, что в основных чертах сохранился д ...