НуклеосомыСтраница 1

Если интерфазные ядра суспендировать в растворе с низкой ионной силой, они разбухнут и в местах разрывов из них высвободятся нити хроматина. На рис. 29.1 показано лизировавшее ядро, из которого вытекают нити. В некоторых местах нити хроматина состоят из плотноупакованного материала, но в тех местах, где они вытянуты, можно видеть, что они состоят из отдельных частиц. Эти частицы называют нуклеосомами. В особенно вытянутых участках видно, что индивидуальные нуклеосомы соединены тонкой нитью - это свободная двухцепочечная ДНК. Таким образом, непрерывная двухцепочечная ДНК проходит через серию частиц.
Индивидуальные нуклеосомы можно получить, обработав хроматин ферментом нуклеазой микрококков. Это эндонуклеаза, которая разрезает нить ДНК в местах соединения между нуклеосомами. Сначала освобождаются группы частиц, а потом отдельные нуклеосомы. Мономерные нуклеосомы отчетливо видны на рис. 29.2 в виде компактных частиц (настоящая форма которых похожа на диск; см. ниже). Они седиментируют примерно со скоростью 11S, что соответствует общей массе в диапазоне 250000-300000 дальтон. Отношение белок/ДНК составляет около 1,25. Димеры, тримеры и т.д. имеют соответствующие свойства при биохимическом анализе или при наблюдении под электронным микроскопом.
Мономерные нуклеосомы содержат ДНК ( ~ 200 п. н.), связанную с гистоновым октамером. Этот октамер содержит гистоны Н2А, Н2В, НЗ и Н4 - по две копии каждого. Иногда их называют гистоновой сердцевиной (гистоновым кором). Такие комплексы схематически изображены на рис. 29.3.
Нуклеосома - белковый комплекс, состоящий из гистонов состава [2H2A, 2H2B, 2H3, 2H4].
Характеристика нуклеосомы
|
нуклеосома 5,5x11нм |
146пн |
|
нуклеосома+H1 |
166пн |
|
нуклеосома+H1+линкер (участок м-у н.) |
200пн |
ДНК в B-форме перекручена на 0,25-0,35 пн на виток спирали, при этом шаг спирали 10,2 пн/виток (у В-формы в растворе - 10,5 пн/виток). Такая ДНК делает 1,75 левых оборота вокруг нуклеосомы. Комплекс не разрушается при разрушении плеч гистонов. N-концевые домены Н3 контактируют с ДНК на входе в коровую частицу и выходе из нее, Н4 связывается с внутренней частью ДНК нуклеосомы H1 - линкерный гистон и выполняет функцию связывания нуклеосом между собой, однако у дрожжей H1 не обнаружен, а его аналог Hho1p не выполняет видимой роли в сворачивании ДНК и взаимодействии нуклеосом между собой.
Любое дополнительное увеличение содержания белка зависит от присутствия небольшого количества негистоновых белков, которые связываются с нуклеосомами.
Нуклеосомную ДНК можно разделить на две части.
ДНК минимальной нуклеосомы имеет постоянную длину 146 п.н. и относительно устойчива к расщеплению нуклеазами. (Другие нуклеазы, в том числе и нуклеаза микрококков, останавливаются перед этим отрезком ДНК.)
Линкерная ДНК заключает в себе остаток повторяющейся единицы. Ее длина может варьировать in vivo от такого малого размера, как 8 п. н., до такого большого, как 114 п.н., на 1 нуклеосому.
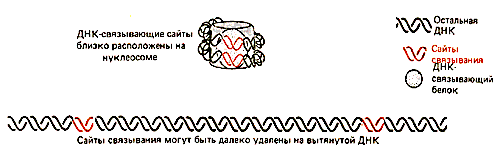
Рассматривая модель, изображенную на рис. 29.8 в виде поперечного сечения, можно видеть, что два витка ДНК лежат близко один к другому. Это, возможно, имеет функциональное объяснение. Один виток вокруг нуклеосомы захватывает 80 п.н., так что точки, отстоящие на это расстояние в свободной двойной спирали, могут оказаться расположенными достаточно близко друг к другу на нуклеосоме. Таким образом, если ДНК-связывающий белок одновременно контактирует с двумя витками ДНК, как показано на рис. 29.9, узнаваемые им последовательности могут отстоять на двойной спирали ДНК гораздо дальше, чем величина соединяющего их участка в белке. Часто обсуждается вопрос о том, может ли стартовая точка транскрипции находиться поблизости от положения — 80 так чтобы обе цепи одновременно контактировали с РНК-полимеразой. (Это внесло бы конкретную деталь в обобщенную модель, показанную на рис. 11.8).
Плотность упаковки отдельной нуклеосомы равна примерно 6 (так как 67 нм ДНК упакованы в частицу длиной около 11 нм). Можно упаковать серию нуклеосом достаточно плотно, чтобы сохранить это отношение. Множество работ по изучению наборов нуклеосом было выполнено на вирусе SV40.
Важным параметром в описании структуры хроматина является степень суперспирализации, которая может возникнуть на нескольких уровнях:
суперспирализация может быть результатом упаковки ДНК на нуклеосоме.
суперспирализация может быть следствием укладки нуклеосом в структуру более высокого уровня.
Состояние суперспирализации во многом может удерживаться белками (по принципу, описанному в гл. 28). Прямые измерения плотности суперспирализации позволят узнать среднее напряжение скручивания ДНК, возникающее в результате образования свободных супервитков, но таким образом нельзя обнаружить суперспирализации, которая удерживается в ходе упаковки ДНК.
Иерархическая функционально-структурная
организация
Все живые системы отличаются высокой упорядоченностью, которая проявляется в их целостной, иерархической функционально-структурной организации и находит свое выражение во взаимообусловленности всех отдельных элементов системы и их подчиненности ее общему функционально-структурному плану. И хотя эта иерархичность организации составляет о ...
Приложения
Приложение А
Таблица 1 Доминирующие виды на правом берегу р. Обь у п. Половинка
МЕСЯЦ
ПРОЦЕНТЫ
ДОМИНИРУЮЩИЕ ВИДЫ
Май
23
23
21
15,8
Ankistrodesmus pseudomirabilis var. spiralis Korschik (Chlorophyta)
Gonatozygon monotaenium De Bary var. monotaenium (Chlorophyta)
Closterium acerosum (Schr) Ehr. f. acerosum (Chlo ...
Механизмы действия эйкозаноидов
Один и тот же тип эйкозаноида может действовать по паракринному и по аутокринному механизму. Например, ТХА2, продуцируемый тромбоцитами при их активации, действует на сами тромбоциты, увеличивая их способность к агрегации, и в то же время действует на окружающие ГМК кровеносных сосудов, способствуя их сокращению. Таким образом создаются ...